双酰胺类杀虫剂:氯虫苯甲酰胺与溴氰虫酰胺的区别及抗性治理
IRAC 第 28 组双酰胺类杀虫剂如何作用于昆虫鱼尼丁受体,氯虫苯甲酰胺和溴氰虫酰胺在杀虫谱和植物体内移动上有何不同,哪些害虫已有抗性记录,以及 IRAC 的用药窗口法如何保持这一类药剂的效果。
作者:刘晓敏(农艺师)技术审核:赵国华(研究员)
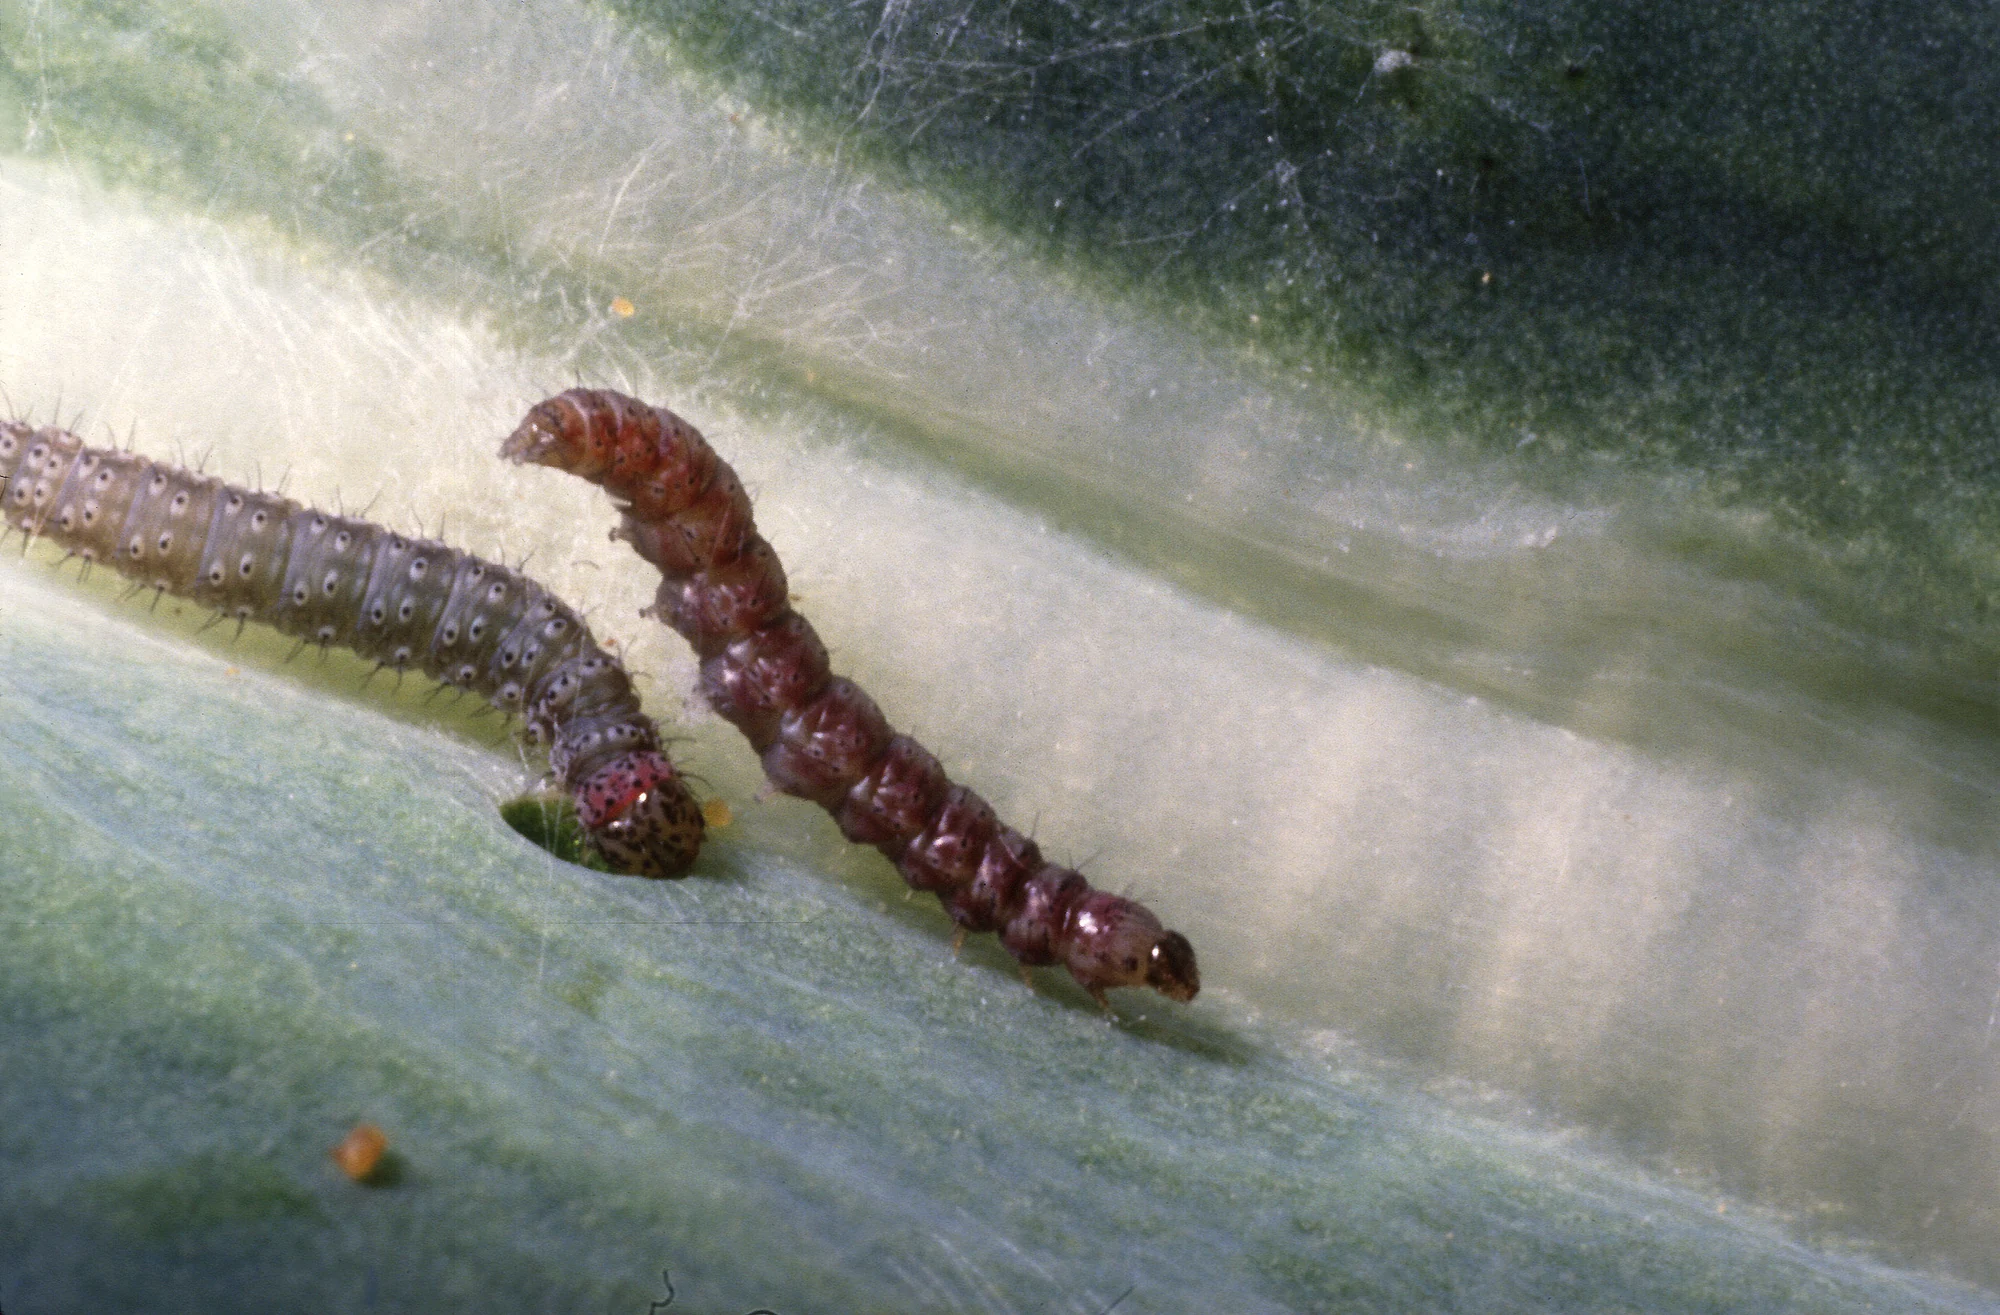
杀虫剂抗性行动委员会(IRAC)将双酰胺类归为第 28 组,即鱼尼丁受体调节剂,目前包括氯虫苯甲酰胺、溴氰虫酰胺、环溴虫酰胺、氟苯虫酰胺和四唑虫酰胺 [1]。由于组内成员作用于同一靶标,IRAC 要求在抗性治理中把所有第 28 组杀虫剂视为同一组 [2]。本文介绍作用机理,比较两种最常用的邻甲酰氨基苯甲酰胺类双酰胺,汇总已有的抗性记录,并列出 IRAC 的轮换规则。
1. 作用机理
鱼尼丁受体调控肌肉细胞内钙库的钙释放。第 28 组杀虫剂与这些受体结合,造成细胞内钙不受控制地释放和耗竭,使肌肉无法继续收缩 [2]。IRAC 的描述是:激活肌肉鱼尼丁受体,导致收缩和瘫痪 [1]。受药昆虫表现为迅速停止取食、行动迟缓、反吐、肌肉瘫痪,最终死亡 [2]。
结构研究表明,邻苯二甲酰胺类和邻甲酰氨基苯甲酰胺类双酰胺结合在受体跨膜区的同一位点,只是结合姿态不同 [3]。该结合位点在昆虫和哺乳动物之间并不保守,双酰胺对昆虫受体的选择性比对哺乳动物受体高约 100 至 1,000 倍 [3]。
2. 氯虫苯甲酰胺与溴氰虫酰胺的比较
两者都属于邻甲酰氨基苯甲酰胺类。氯虫苯甲酰胺是这一类中的第一个品种,对鳞翅目害虫尤其有效 [4]。溴氰虫酰胺化学结构相似,但杀虫谱更广,能防治蚜虫、粉虱等刺吸式害虫 [4];有研究称它是第一个能有效防治刺吸式害虫的双酰胺 [5]。
氯虫苯甲酰胺与溴氰虫酰胺:来源内容
| 项目 | 氯虫苯甲酰胺 | 溴氰虫酰胺 | 来源 |
|---|---|---|---|
| IRAC 分组 | 28 组,双酰胺类 | 28 组,双酰胺类 | [1] |
| 主要杀虫谱 | 对鳞翅目尤其有效,也作用于其他咀嚼式口器昆虫 | 更广:鳞翅目、双翅目、鞘翅目、半翅目和缨翅目,包括蚜虫和粉虱 | [4][6] |
| 理化性质 | 辛醇水分配系数(log Pow)较高,水溶性较低 | log Pow 较低,水溶性较高 | [6] |
| 在玉米体内的移动 | 种子处理后被吸收并经木质部向上运输到新叶;从喷施叶片向新叶的转移未观察到 | 同一研究中表现相同 | [6] |
| 已有抗性记录 | 小菜蛾、甜菜夜蛾、草地贪夜蛾、番茄潜叶蛾 | 中国的烟粉虱卵;巴西的草地贪夜蛾 | [7][8][9][10][11] |
两者在实践中的差别在于防治对象,而不是绕开抗性的办法:两者属于同一作用机理组 [1],下文所述的交互抗性已在各双酰胺之间出现 [7][11]。
3. 已有的抗性记录
有些害虫对双酰胺产生抗性的速度很快 [4][7]。关于小菜蛾的抗性机理,来源说法不一:IRAC 2012 年的海报认为可能是代谢抗性,并对所有双酰胺产品交互抗性 [7];后来的研究则发现了鱼尼丁受体的靶标突变,其中 G4946E 突变已在 3 个大洲至少 9 个国家的小菜蛾中报道 [4]。
小菜蛾(Plutella xylostella)
2009 年泰国在氟苯虫酰胺上市后 18 个月内即出现抗性,并对氯虫苯甲酰胺交互抗性;次年菲律宾出现抗性,2011 年台湾以及中国东南部广州地区也有报道 [4][7]。中国 2024 年全国监测中,小菜蛾对氯虫苯甲酰胺以中等至高水平抗性为主,且抗性倍数较 2023 年上升 [9]。
夜蛾类(Spodoptera)
中国 2024 年监测中,甜菜夜蛾对氯虫苯甲酰胺以高水平抗性为主,上海、浙江和湖北监测种群的抗性倍数均超过 140 倍 [9]。美国于 2020 年首次报道甜菜夜蛾对氯虫苯甲酰胺的抗性;在室内停止接触药剂后抗性下降,作者认为可通过撤除选择压来管理 [12]。草地贪夜蛾方面,截至 2022 年双酰胺抗性仅见于室内筛选品系,从巴西田间种群筛选出的品系中鉴定出 I4734M/K 突变 [10];此后巴西田间种群对溴氰虫酰胺的敏感性在 2017 至 2023 年间下降,筛选品系对氟苯虫酰胺、氯虫苯甲酰胺和环溴虫酰胺均表现出高水平交互抗性 [11]。
番茄潜叶蛾(Tuta absoluta)
IRAC 列出意大利、希腊和以色列的番茄潜叶蛾对双酰胺类已有抗性 [8]。
粉虱
中国 2024 年监测发现,烟粉虱卵对溴氰虫酰胺表现为中等至高水平抗性,上海、海南和山西监测种群为高水平抗性 [9]。研究表明,解毒酶 UDP 糖基转移酶表达升高是烟粉虱对溴氰虫酰胺产生代谢抗性的关键机理,这些酶还介导了对氯虫苯甲酰胺的交互抗性 [5]。
4. IRAC 抗性治理建议
IRAC 的总原则是:害虫的连续世代不应使用同一作用机理组的杀虫剂,施药按作物生育阶段和害虫生物学安排为若干用药窗口 [1]。对第 28 组,双酰胺工作组给出以下规则 [2][7]:
- 把所有第 28 组产品视为同一组,不要在双酰胺之间互相轮换 [2]。
- 采用用药窗口法,避免相邻世代的害虫接触第 28 组药剂 [2][7]。
- 一个用药窗口约 30 天,视当地世代历期为 15 至 45 天,应大致等于目标害虫的一个世代;同一窗口内或针对同一世代可以多次施药 [7]。
- 一个第 28 组用药窗口之后,轮换到使用其他作用机理有效杀虫剂的窗口 [2]。
- 生育期短于 50 天的作物,把整个生育期视为一个第 28 组用药窗口,同一地块下一茬改用其他作用机理 [7]。
- 第 28 组用药窗口合计不应超过从出苗到收获的作物生育期的约 50% [2][7]。
- 不要降低标签用量,针对最敏感的虫态施药,并监测田间效果 [2]。
- 目标种群已知对任一组分有抗性时,不要使用桶混或预混制剂 [2]。
IRAC 还强调,轮换用的药剂必须对害虫防效良好:与防效差的产品轮换会增加双酰胺抗性风险 [7]。
5. 目录中的品种示例
下表列出华生目录中属于第 28 组、或在来源中被列为轮换选择的有效成分。分组已按 IRAC 11.5 版核对 [1]。
华生目录中的双酰胺及轮换药剂
| 有效成分 | IRAC 分组 | 目录剂型 | 来源内容 |
|---|---|---|---|
| 氯虫苯甲酰胺 | 28 | 原药、悬浮剂、种子处理悬浮剂、水分散粒剂、微囊悬浮-悬浮剂 | 邻甲酰氨基苯甲酰胺类双酰胺,对鳞翅目尤其有效 [4];种子处理后经木质部向上运输 [6] |
| 溴氰虫酰胺 | 28 | 种子处理悬浮剂 | 杀虫谱更广,包括蚜虫和粉虱 [4];与氯虫苯甲酰胺属于同一个第 28 组用药窗口 [2] |
| 甲氨基阿维菌素苯甲酸盐 | 6 | 原药、水分散粒剂、可分散油悬浮剂 | 第 6 组 [1];中国将其列为棉铃虫的轮换选择 [9] |
| 多杀霉素 | 5 | 悬浮剂、可分散油悬浮剂 | 第 5 组 [1];中国将其列为甜菜夜蛾和棉铃虫的轮换选择 [9] |
| 茚虫威 | 22A | 原药、悬浮剂、水分散粒剂、乳油 | 第 22A 组 [1];中国将其列为小菜蛾的轮换选择,但甜菜夜蛾对其抗性已达高水平 [9] |
| 虱螨脲 | 15 | 原药、悬浮剂、乳油、水分散粒剂 | 第 15 组 [1];中国将其列为甜菜夜蛾的轮换选择 [9] |
| 虫螨腈 | 13 | 悬浮剂 | 第 13 组 [1];中国将其列为小菜蛾的轮换选择 [9] |
| 甲氧虫酰肼 | 18 | 原药、悬浮剂、水分散粒剂 | 第 18 组 [1];中国甜菜夜蛾对其以中等水平抗性为主 [9] |
上表说明的是 IRAC 分组和所引来源的内容,不代表登记用途。可以使用哪些产品、用于哪些作物、用量和间隔,均以各国登记和产品标签为准。
6. 地区情况
中国
对高水平抗性地区,2024 年全国监测报告建议:防治小菜蛾停止使用氯虫苯甲酰胺,防治甜菜夜蛾暂停使用氯虫苯甲酰胺和茚虫威,防治烟粉虱暂停使用溴氰虫酰胺;优先选用生物农药,轮换其他作用机理的药剂,每季蔬菜每种药剂使用不超过 1 次 [9]。长江流域棉区棉铃虫对氯虫苯甲酰胺仍为敏感至低水平抗性,但抗性倍数在上升 [9]。
拉丁美洲
在巴西,溴氰虫酰胺被广泛用于防治包括草地贪夜蛾在内的刺吸式和食叶害虫,2017 至 2023 年间田间敏感性下降,在塞拉多等集约化种植区尤为明显 [11]。研究者已对巴西田间种群开展鱼尼丁受体抗性突变的大规模筛查,以支持抗性治理 [10]。
其他地区
在欧洲和中东,意大利、希腊和以色列已有抗双酰胺的番茄潜叶蛾记录 [8]。美国于 2020 年首次报道甜菜夜蛾对氯虫苯甲酰胺的抗性 [12]。
7. 实用步骤
- 列出农场使用的所有第 28 组产品,包括种子处理剂和预混制剂,并作为同一组计数 [2]。
- 查阅当地主要害虫的双酰胺抗性监测结果 [9]。
- 按约一个害虫世代划分全季用药窗口 [7]。
- 第 28 组的使用不超过作物生育期的约一半,绝不连续用于相邻世代 [2][7]。
- 其他窗口使用其他 IRAC 分组的有效杀虫剂,并按建议使用生物农药 [1][9]。
- 保持标签全量,针对低龄幼虫施药 [2]。
- 监测害虫种群,留意田间防效下降 [2]。
常见问题
氯虫苯甲酰胺和溴氰虫酰胺有什么区别?
两者都是 IRAC 第 28 组的邻甲酰氨基苯甲酰胺类双酰胺 [1]。氯虫苯甲酰胺对鳞翅目幼虫尤其有效,溴氰虫酰胺杀虫谱更广,包括蚜虫和粉虱 [4];溴氰虫酰胺的水溶性也更高 [6]。
氯虫苯甲酰胺和溴氰虫酰胺可以轮换使用吗?
不能算轮换。IRAC 在抗性治理中把所有第 28 组杀虫剂视为同一组,两者互换不构成轮换 [2]。
双酰胺类杀虫剂的作用机理是什么?
激活昆虫鱼尼丁受体,使肌肉内钙不受控制地释放,害虫迅速停止取食,继而瘫痪死亡 [1][2]。
氯虫苯甲酰胺有内吸性吗?
玉米研究中,种子处理后它经木质部向上运输到新叶,但从喷施叶片向新叶的转移未观察到 [6]。
哪些害虫对双酰胺类有抗性?
小菜蛾、甜菜夜蛾、草地贪夜蛾、番茄潜叶蛾已有抗性记录,中国的烟粉虱卵对溴氰虫酰胺也有抗性 [7][8][9][11]。
双酰胺一季能用几次?
IRAC 没有规定固定次数:在约一个世代的用药窗口内使用第 28 组,不连续用于相邻世代,合计不超过作物生育期的约一半 [2][7]。请遵守当地标签和建议;中国的监测报告对高抗地区建议每季蔬菜每种药剂不超过 1 次 [9]。
延伸阅读
- 咨询氯虫苯甲酰胺、溴氰虫酰胺、甲氨基阿维菌素苯甲酸盐和多杀霉素
- 氯虫苯甲酰胺:剂型与采购咨询
- 溴氰虫酰胺:剂型与采购咨询
- 甲氨基阿维菌素苯甲酸盐:剂型与采购咨询
- 多杀霉素:剂型与采购咨询
- 茚虫威:剂型与采购咨询
- 虱螨脲:剂型与采购咨询
- 杀虫剂与杀螨剂:采购与供应
- [1] IRAC(2026). Mode of Action Classification Scheme, version 11.5, February 2026.
- [2] IRAC Group 28 (Diamide) Working Group(2010). Insecticide resistance management: global guidelines for IRAC Group 28 (diamide) insecticides, version 2.1.
- [3] Lin L., Wang C., Wang W., Jiang H., Murayama T., Kobayashi T. et al.(2024). Cryo EM structures of ryanodine receptors and diamide insecticides reveal the mechanisms of selectivity and resistance. Nature Communications 15: 9056.
- [4] Troczka B. J., Williamson M. S., Field L. M., Davies T. G. E.(2017). Rapid selection for resistance to diamide insecticides in Plutella xylostella via specific amino acid polymorphisms in the ryanodine receptor. NeuroToxicology 60: 224.
- [5] Tan H., Hu X., Hu J., Xu W., Wang Q., Liu X., Guo L.(2026). UDP glycosyltransferase confers anthranilic diamide resistance in Bemisia tabaci. Journal of Advanced Research 86: 1.
- [6] Pes M. P., Melo A. A., Stacke R. S., Zanella R., Perini C. R., Silva F. M. A. et al.(2020). Translocation of chlorantraniliprole and cyantraniliprole applied to corn as seed treatment and foliar spraying to control Spodoptera frugiperda (Lepidoptera: Noctuidae). PLoS One 15(4): e0229151.
- [7] IRAC Group 28 (Diamide) Working Group(2012). Stewardship of the ryanodine receptor modulators: resistance management guidelines for Group 28 insecticides (poster, version 4).
- [8] IRAC(未注明日期). Tomato leafminer, Tuta absoluta: pest profile and resistance profile.
- [9] 全国农业技术推广服务中心(2025). 全国农技中心印发2024年油料和经济作物有害生物抗药性监测报告. 农业农村部网站.
- [10] Okuma D. M., Cuenca A., Nauen R., Omoto C. et al.(2022). Large scale monitoring of the frequency of ryanodine receptor target site mutations conferring diamide resistance in Brazilian field populations of fall armyworm, Spodoptera frugiperda. Insects 13(7): 626.
- [11] Thiesen L. V., Gonçalves G. C., Guidolin A. S., Nascimento A. R. B., Coutinho E. F., Borba J. P. et al.(2025). Characterization of cyantraniliprole resistance in Spodoptera frugiperda: selection, inheritance pattern, and cross resistance to other diamide insecticides. Pest Management Science 81(8): 4677.
- [12] Rabelo M. M., Santos I. B., Paula-Moraes S. V. et al.(2022). Spodoptera exigua (Hübner) (Lepidoptera: Noctuidae) fitness and resistance stability to diamide and pyrethroid insecticides in the United States. Insects 13(4): 365.